Lecciones de biotecnología para la vida diaria
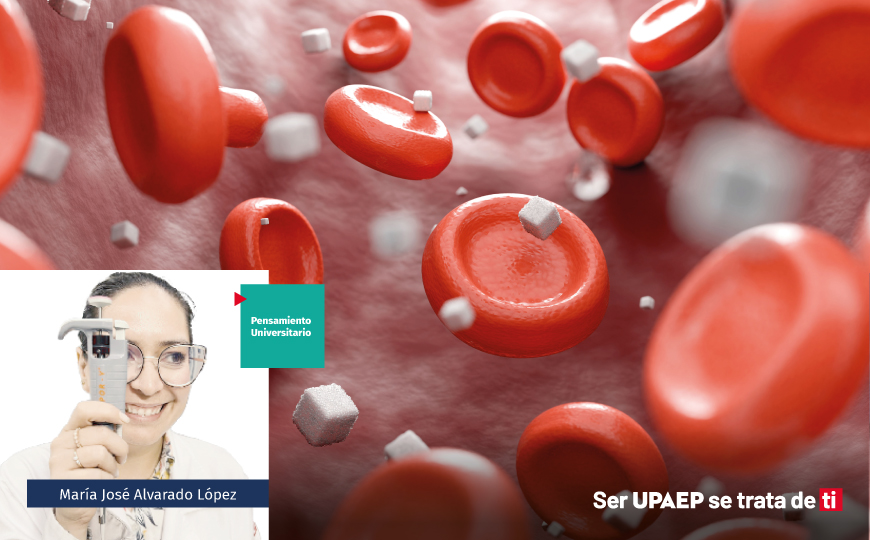
Sí, ya sé que se lee trilladísimo. No se trata de otra frase motivacional de cierre de semestre; es una afirmación bastante literal: la vida es dulce porque todas las células conocidas, bacterias, arqueas y eucariontes, están cubiertas de azúcares.
Y la superficie no es superficial. Cuando estudiamos a los carbohidratos, casi siempre pensamos en la glucosa y la glucólisis, como si el destino de todos los azúcares fuera solo convertirse en energía. Pero muchos azúcares no están ahí para quemarse: están unidos a proteínas y lípidos, formando glicoconjugados**, justo en el lugar donde una célula toca al mundo: su superficie.**
No estoy hablando de azúcar espolvoreada sobre la membrana celular. Se trata de una superficie organizada, diversa y dinámica que protege a la célula y participa en la manera en que reconoce, se adhiere, responde y es reconocida por otras células. La acumulación de glicoproteínas y glicolípidos en la superficie de la membrana forma una cubierta compleja llamada glicocálix, no como un glaseado molecular, sino como una estrategia de protección y organización.
Un glicano es una cadena de azúcares. Cuando se une covalentemente a una proteína o a un lípido, forma una glicoproteína o un glicolípido. Estos glicoconjugados constituyen buena parte del glicocálix celular. Los glicanos son otra chulería. No se construyen leyendo un molde lineal como ocurre con el ADN, el ARN o las proteínas. En las células eucariontes, su estructura final depende de qué enzimas están presentes, en qué compartimento celular se encuentran, qué azúcares tienen disponibles y cuánto tiempo permanece la molécula en la “línea de ensamblaje” del retículo endoplásmico y el aparato de Golgi de la célula.
Además, pueden ser muy variados dependiendo del tipo de monosacárido, la posición y orientación de su enlace, las ramificaciones de la cadena y modificaciones posteriores, como la sulfatación. Esto les brinda una versatilidad increíble. Broussard y Boyce ilustraron esta complejidad con una comparación: tres aminoácidos o nucleótidos distintos (en proteínas, ADN o RNA, respectivamente) pueden ordenarse en seis trímeros lineales si cada uno se utiliza una vez; con tres hexosas de un glicano, las posibilidades ascienden a 27,648 trisacáridos hipotéticos diferentes. No es que todos estos trisacáridos existan, pero la inmensidad estructural de los glicanos es impresionante porque, con pocas piezas, la célula construye un vocabulario descomunal.
Como ya hemos dicho en otras columnas, el ADN conserva instrucciones, pero no le entrega al Golgi una foto del producto final. Le entrega parte de las herramientas y la célula construye con ellas según su historia, su estado y su contexto. Los glicanos resultantes también reflejan ese momento fisiológico.
Por ejemplo, nuestro grupo sanguíneo. Los antígenos A y B de estos tipos sanguíneos son glicanos. La enzima del grupo A añade una N-acetilgalactosamina al antígeno H; la del grupo B, una galactosa. Una pequeña diferencia en el azúcar terminal del antígeno basta para modificar el reconocimiento inmunológico y determinar la compatibilidad dentro del sistema ABO. Algo tan definitivo como nuestra compatibilidad sanguínea depende de qué azúcar ocupa el extremo de una estructura en la superficie celular, lo que demuestra que lo exterior no es accesorio.
Una misma proteína puede existir en varias glicoformas, es decir, asociada a diferentes glicanos y, por ende, variar en estabilidad, localización, vida media o interacción con otras moléculas. Por eso, saber la secuencia de los aminoácidos de una proteína no siempre basta para saber exactamente cómo se comportará.
En biotecnología esto significa que no basta con producir la proteína necesaria, sino que también hay que conseguir que la célula la endulce correctamente. En los anticuerpos terapéuticos, por ejemplo, los glicanos de la región Fc influyen en su interacción con las células inmunitarias. El perfil de glicosilación puede cambiar según la célula productora y las condiciones del cultivo: nutrientes, pH, oxígeno o densidad celular. Por eso, la FDA considera la glicosilación un atributo crítico en la calidad de los anticuerpos biotecnológicos.
Un ejemplo de lo anterior es la darbepoetina alfa, una versión modificada de la eritropoyetina utilizada para estimular la formación de glóbulos rojos. Fue diseñada con dos cadenas adicionales de carbohidratos respecto de la eritropoyetina recombinante. Aunque tiene menor afinidad por el receptor, permanece más tiempo en circulación y resulta más potente in vivo. Es decir**, los azúcares no son un adorno añadido a la proteína, sino que modifican su farmacocinética y su efecto biológico.**
Ahora quiero llegar a los exopolisacáridos bacterianos, los EPS, porque ahí esta historia toca directamente a mi laboratorio. Muchas bacterias liberan polímeros de azúcares que favorecen la adhesión y forman parte de la matriz de las biopelículas. Dependiendo del microorganismo y del polímero, pueden ayudar a retener agua, mantener unidas a las células y protegerlas frente a distintas condiciones de estrés. En nuestro laboratorio estudiamos el EPS producido por Microbacterium paraoxydans GM09, su capacidad emulsificante, su interacción con superficies hidrofóbicas y su posible aplicación para el tratamiento de contaminantes.
En una biopelícula (la “capita” de bacterias que se forma cuando las cultivas), esos azúcares ya no están solo alrededor de la célula que los produjo: pasan a formar parte de una matriz que puede sostener y proteger a la comunidad. No voy a decir que las bacterias produzcan EPS para darnos una lección sobre la comunión, pero sí nos obligan a mirar las fronteras de otra manera.
Las fronteras vivas no sirven solo para separar. También permiten a las células protegerse, reconocer y ser reconocidas. Además, el glicocálix, con todo y su dulzor, no es una frontera romántica. Los mismos glicanos que permiten comunicación y reconocimiento también pueden ser aprovechados por virus, bacterias y toxinas para adherirse o entrar. Hacerse reconocible implica cierta vulnerabilidad.
La comunión no exige borrar la identidad, pero la identidad tampoco alcanza su plenitud en el aislamiento. El encuentro verdadero necesita límites: no muros que impidan toda relación ni fronteras tan desdibujadas que ya no protejan nada. En la célula no todo lo esencial está escondido dentro; parte se escribe precisamente en la frontera donde puede ser reconocida.
Quizá la vida no sea dulce porque esté libre de amargura. Tal vez lo sea porque incluso sus fronteras hacen posible el encuentro. ¿Y si una parte de lo que somos solo pudiera hacerse visible en la forma en que nos encontramos con los demás?
Cualquier cosa que quieras preguntarme de lo que escribo, dímelo:
Seguimos con las lecciones de biotecnología para la vida diaria.